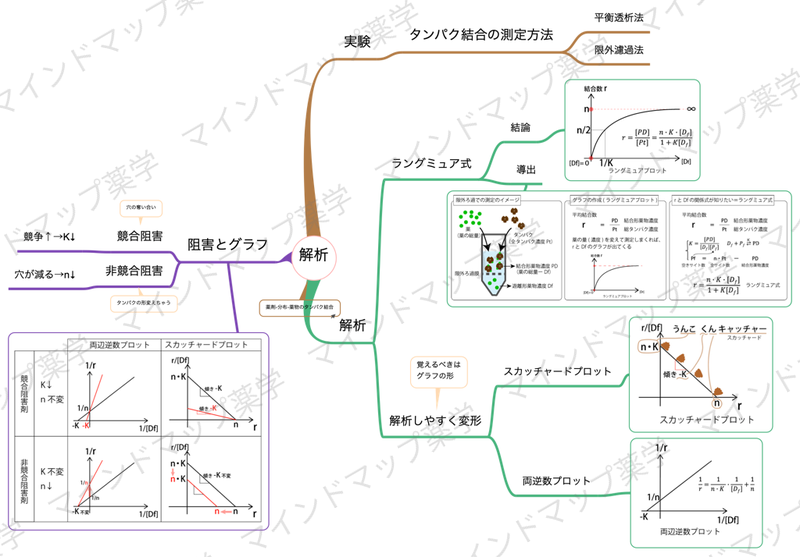
薬物のタンパク結合の基礎では、「ワルファリンサイトをインドメタシンが奪い合う」という話を言葉で説明しました。この記事では、その奪い合いを数字とグラフで扱えるようにします。
先にゴールを言い切っておきます。この単元で最後に解けるようにならないといけないのは、「グラフが2種類 × 阻害が2種類 = 4通り」の、線の動き方です。それだけです。式の導出は毎年のように出るものではありませんが、グラフの形は繰り返し出ます。
とはいえ、いきなり切片だけ覚えても頭に残りません。なので「どんな実験をして、何を縦軸・横軸に取ったのか」から順に組み立てます。 実験の絵が浮かぶと、r/[Df]という気持ち悪い縦軸にも理由があることが分かります。
この記事は、もともと解説授業の動画で話している内容を記事に起こしたものです。読むより耳から流し込みたい人は、解説授業のページに無料のサンプル動画があるので、先に雰囲気を確かめてみてください。
Contents
何を測っているのか ― 限外ろ過法と平衡透析法
薬とタンパクの結合を調べるとき、直接測れるのは「非結合形(遊離形)の濃度」だけです。入れた薬の総量は自分で決めた値なので分かっている。だから総量から遊離形を引けば結合形が出る——この引き算が、すべての出発点になります。
遊離形だけを取り出す方法が2つあります。
| 方法 | やり方 | 特徴 |
|---|---|---|
| 限外ろ過法 | 薬とタンパクを平衡にした液を、限外ろ過膜の付いた容器に入れて遠心する。タンパクと結合形は膜の上に残り、遊離形だけが膜を通って下にたまる | 短時間で済むので現在よく使われる |
| 平衡透析法 | 半透膜で仕切った2つのセルの片側にタンパク溶液、もう片側に薬物溶液を入れ、時間をかけて平衡に達するのを待つ | 時間はかかるが、原理が透明。計算問題として出しやすい |
限外ろ過では、タンパクの量を固定したまま、薬の量だけを少しずつ変えて何度も実験します。 薬を1入れたときの遊離形はここ、2ならここ、3ならここ——と点を打っていく。その点の集まりが、このあと出てくるプロットの正体です。 グラフは一発で描けるものではなく、何度も実験して得た点を並べたものだと分かっていると、縦軸の意味も入ってきます。
登場人物と「平均結合数 r」
記号を先に固定します。
| 記号 | 読み | 中身 |
|---|---|---|
| [Pt] | 総タンパク濃度 | 実験前に固定する値 |
| [Df] | 遊離形薬物濃度 | 実験で測定される値 |
| [PD] | 結合形薬物濃度 | 薬の総量 −[Df] |
| n | サイト数 | タンパク1分子が持つ結合部位の数 |
| K | 結合定数 | 結合の強さ。大きいほど離れにくい |
そして、この単元の主役が平均結合数 r です。
r =[PD]/[Pt]
タンパク1分子あたり、平均して何個の薬がぶら下がっているか。 たとえばタンパクが100個あって、結合している薬の分子が200個なら、r = 2 です。
なぜ「平均」なのか。タンパク1分子には結合部位がいくつもあり、しかもその数nが実験前には分かっていないからです。だから、まずは「いま平均で何個付いているか」という測れる量から入って、そこからnを逆算しに行く。 この順番が、この単元の設計です。
実際、薬をどんどん足して[Df]を大きくしていくと、rはある値に近づいて頭打ちになります。 席が埋まりきるからです。その頭打ちの値こそがn——実験でnを知る、というのはこういう意味です。
ラングミュア式:rと[Df]の関係を式にする
頭打ちになる曲線を数式にしたものがラングミュア式です。導出は2本の式から始まります。
① 平衡定数の定義 Df + Pf ⇄ PD より
K =[PD]/([Df][Pf])
ここで[Pf]は「空いているサイトの濃度」です。タンパク分子の濃度ではありません。ここがラングミュア式のミソで、1分子が複数の席を持つ以上、平衡を書くときの相手は「タンパク」ではなく「空席」でなければ計算が合いません。
② 空席の数え方
[Pf]= n[Pt]−[PD]
全サイト数(n × 総タンパク濃度)から、すでに埋まっている席(結合形薬物濃度)を引く。 薬1分子が1席を占めるので、埋まっている席の数は[PD]そのものです。
②を①に代入して[PD]について整理し、両辺を[Pt]で割ると、
r = n・K・[Df]/(1 + K[Df])
これがラングミュア式です。[Df]を大きくすると分母と分子のK[Df]が効いてきて、rはnに漸近します。 さきほど言葉で説明した「頭打ち」が、そのまま式に入っています。
なお、この形はミカエリス・メンテン式と同じ形です。酵素のほうでVmaxに漸近するのと、ここでnに漸近するのは同じ数学をしています。だからこのあと出てくる直線化も、阻害のときの動き方も、酵素のときと同じ発想が使えます(ラインウィーバー・バークプロットと競合阻害・非競合阻害)。
スキャッチャードプロット:「うんこくんキャッチャー」
曲線のままではKもnも読み取れないので、直線になるように変形します。 ラングミュア式の分母を払って[Df]で割ると、
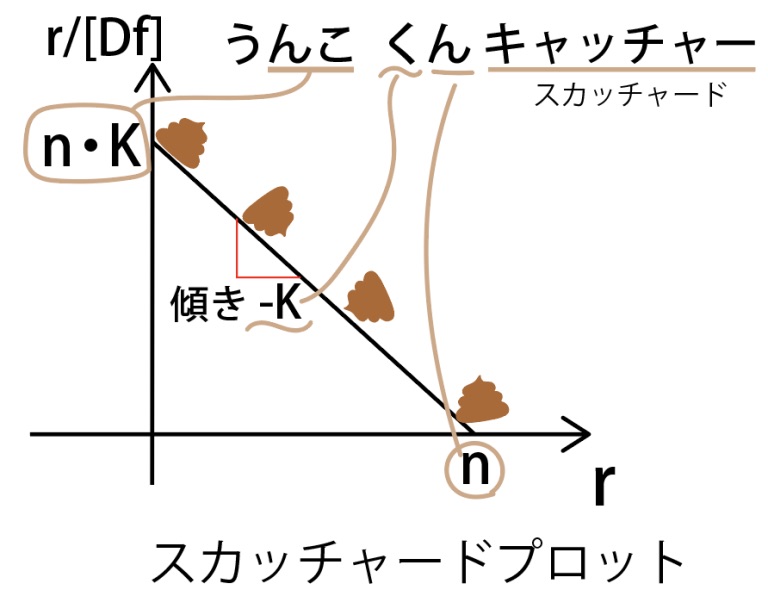
r/[Df]= −K・r + nK
縦軸を r/[Df]、横軸を r に取れば、傾き −K・切片 nK の直線になります。これがスキャッチャードプロット(スカッチャードプロットとも書きます)です。
この形は変形してもメリットが見えにくく、意味から思い出すのが難しい。なので覚えてしまいます。語呂は「うんこくんキャッチャー」です。
- うんこ … n・K(縦軸切片)
- く … 傾き −K
- ん … n(横軸切片)
- キャッチャー … スカッチャード(プロットの名前)
縦軸はr/[Df]、横軸はr。横軸がrだという点が最初は気持ち悪いのですが、「席が埋まるほど、次の1個は付きにくくなる」という右下がりの関係を描いていると思うと収まりがよくなります。横軸のrが増える(席が埋まる)につれて、縦軸のr/[Df] (結合のしやすさ)が下がっていく。そして席が全部埋まったところ、つまり横軸との交点がnです。
両辺逆数プロット
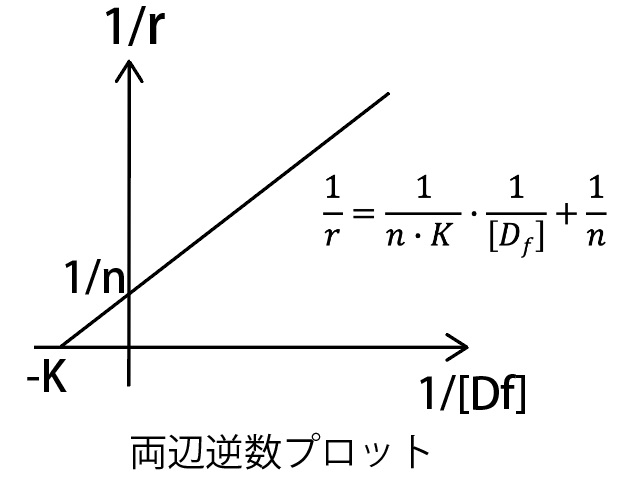
もう1つが両辺逆数プロットです。こちらは名前のとおり、ラングミュア式の両辺をひっくり返すだけなので、覚えるというより作れます。
1/r = 1/(n・K)× 1/[Df]+ 1/n
- 縦軸 … 1/r
- 横軸 … 1/[Df]
- 傾き … 1/(n・K)
- 縦軸切片 … 1/n
- 横軸切片 … −K
横軸切片は、1/r = 0 と置いて解けば出ます。0 = 1/(nK)× x + 1/n より x = −K。ラインウィーバー・バークプロットで横軸切片が −1/Km になるのと同じ操作です。
競合阻害・非競合阻害とグラフの動き
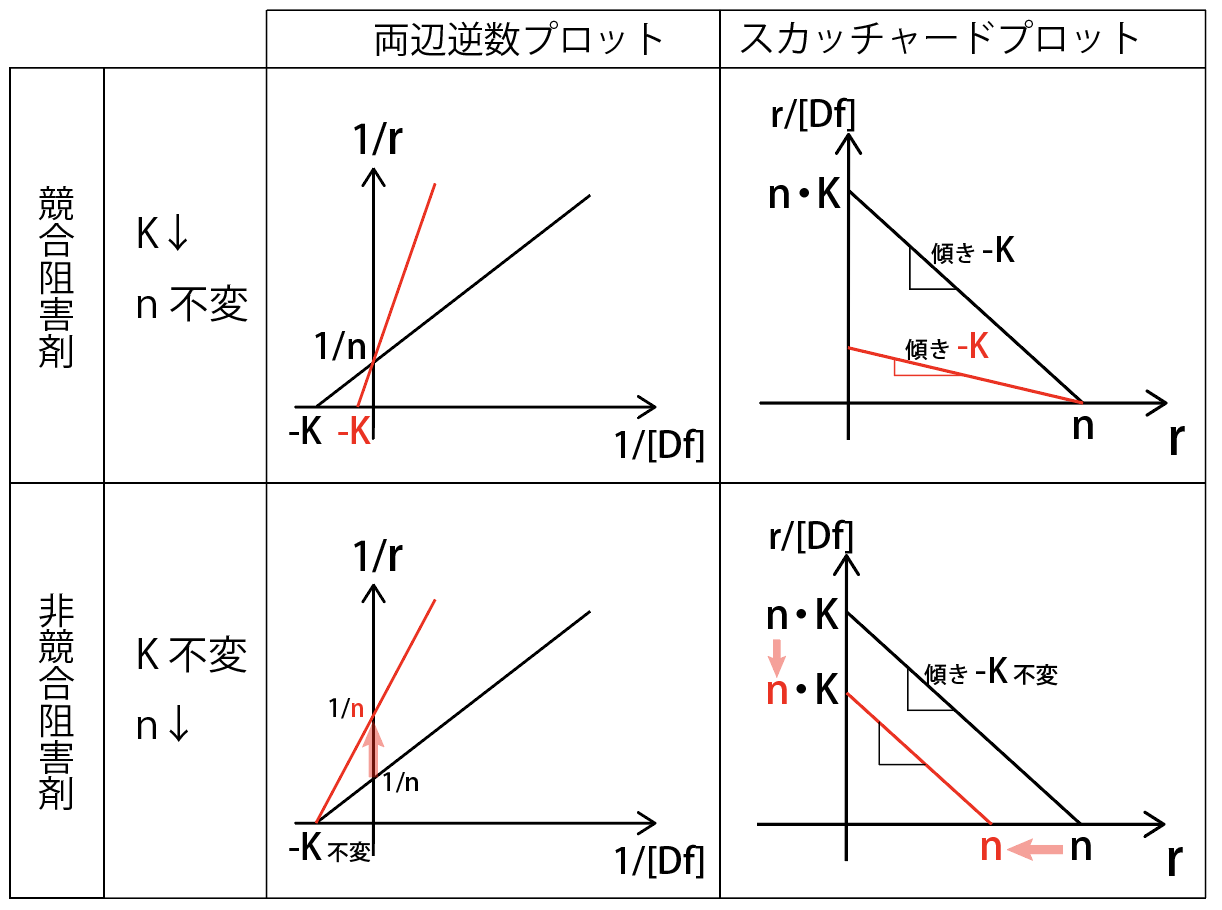
ここがゴールです。まず「どの文字が動くか」だけを先に確定させます。
競合阻害は穴の奪い合いです。別の薬が同じ席に入ってくるので、サイトの数n自体は変わりません。 変わるのは結合のしやすさのほう。K =[PD]/([Df][Pf])という定義に戻ると、競合相手に席を取られたぶん[PD]が小さく見えるので、Kは下がります。
非競合阻害は穴そのものが減るタイプです。阻害薬がタンパクの形を変えてしまうので、使える席の数nが減ります。 一方、残った席での結合の強さは変わらないので、Kは不変です。
| 動く文字 | スキャッチャードプロット | 両辺逆数プロット | |
|---|---|---|---|
| 競合阻害 | K↓、n不変 | 横軸切片nは動かない。 縦軸切片nKが下がり、傾き−Kがゆるやかになる | 縦軸切片1/nは動かない。 横軸切片−Kが原点側(右)へ寄り、傾きが急になる |
| 非競合阻害 | n↓、K不変 | 傾き−Kは変わらない。 線が平行のまま内側へ下がり、縦軸切片nKも横軸切片nも下がる | 横軸切片−Kは動かない。 縦軸切片1/nが上がり、傾きが急になる |
覚え方はシンプルで、「動かない切片はどちらか」を1つ押さえるだけです。
- 競合阻害 … nが不変 → nが出てくる切片が動かない。 スキャッチャードなら横軸切片n、両辺逆数なら縦軸切片1/n
- 非競合阻害 … Kが不変 → Kが出てくるほうが動かない。 スキャッチャードなら傾き−K、両辺逆数なら横軸切片−K
問題用紙の上では、まず不動点を1つ見つけて、そこを支点に線が回る(または平行移動する)と考えると速いです。 酵素の阻害でラインウィーバー・バークプロットを読むときと、まったく同じ手順です。
国試ではこう問われる
第97〜111回の15年分では、結合定数が4回(第99・102・104・110回)、両逆数が3回(第99・107・110回)登場します。数としては多くありませんが、出るときは配点の重い理論問題で、しかも図を読ませる形です。取りこぼしが痛い単元です。
| 回 | 問われ方 | ポイント |
|---|---|---|
| 第104回・問165 | 平衡透析法の実験値から結合定数K(L/mmol)を計算させる(1つ選べ) | 答えは2.5。 定義式に入れるだけだが、[Pf]を「タンパク濃度」と取り違えると解けない |
| 第102回・問166 | K = 10(μmol/L)⁻¹、結合部位数2のスキャッチャードプロットを実線で、競合的に阻害された場合を点線で表した図を選ばせる | 実線は縦軸切片 nK = 20、横軸切片 n = 2。 点線は横軸切片2を動かさず、傾きだけゆるやかに |
| 第110回・問171 | K = 10(nmol/L)⁻¹、結合部位数2の両逆数プロットと、競合的に阻害された場合の図を選ばせる | 元の線は縦軸切片 1/n = 0.5、横軸切片 −K = −10。 競合阻害では縦軸切片0.5を動かさず、横軸切片を原点側へ |
| 第99回・問168 | 与えられた両逆数プロットの図から結合定数Kを読み取らせる | 横軸切片が−Kであることを知っているかどうかだけで決まる |
掘り下げるなら第104回・問165です。計算そのものは小学校の割り算ですが、登場人物を1つでも取り違えると詰みます。
問題はこうです。半透膜で隔てた2つのセルの一方に0.6 mmol/Lのアルブミン溶液、他方に0.6 mmol/Lの薬物溶液を同容積入れる。平衡に達したとき、アルブミン溶液中の薬物濃度は0.4 mmol/L、他方は0.2 mmol/Lだった。アルブミン1分子あたりの結合部位数は1とする。
半透膜を自由に行き来できるのは遊離形の薬だけです。ということは、タンパクがいない側の0.2 mmol/Lが、そのまま遊離形濃度[Df]になります。アルブミン側の0.4 mmol/Lは遊離形と結合形の合計ですから、
[PD]= 0.4 − 0.2 = 0.2 mmol/L
ここからが本番です。[Pf]は空席の濃度でした。n = 1、[Pt]= 0.6 なので全サイト数は0.6。そこから埋まっている0.2を引いて、
[Pf]= 1 × 0.6 − 0.2 = 0.4 mmol/L
あとは定義式に入れるだけです。
K =[PD]/([Df][Pf])= 0.2 /(0.2 × 0.4)= 2.5 (L/mmol)
この問題の山場は、[Pf]に0.6(タンパクの濃度)をそのまま入れないことの一点です。入れてしまうと0.2/(0.2 × 0.6)≒ 1.7 となり、選択肢に無い値になります。ラングミュア式の導出で[Pf]= n[Pt]−[PD]という1行を通しておくと、この取り違えが起きません。 導出は「国試に出ないから飛ばしてよい」と言われがちですが、この1行だけは残しておく価値があります。
ちなみにこの実験での平均結合数は r =[PD]/[Pt]= 0.2/0.6 ≒ 0.33。サイトが1つに対して、3分子に1つしか埋まっていないという状態です。プロットで言えば、横軸のかなり左側の1点にあたります。
まとめ
- 測れるのは遊離形濃度だけ。総量 − 遊離形 = 結合形という引き算がすべての出発点
- 測定法は限外ろ過法(遠心・短時間・現在の主流)と平衡透析法(半透膜・時間がかかる・計算問題の定番)
- 平均結合数 r =[PD]/[Pt]。 薬を増やしていくとrはサイト数nに漸近する
- ラングミュア式 r = nK[Df]/(1 + K[Df])。 導出で使う[Pf]= n[Pt]−[PD](空席の数)が計算問題の急所
- スキャッチャードプロットは「うんこくんキャッチャー」。 うんこ = 縦軸切片nK、く = 傾き−K、ん = 横軸切片n、キャッチャー = スカッチャード
- スキャッチャードプロットの縦軸はr/[Df]、横軸はr
- 両辺逆数プロットはラングミュア式をひっくり返すだけ。 縦軸1/r、横軸1/[Df]、縦軸切片1/n、横軸切片−K、傾き1/(nK)
- 競合阻害はK↓・n不変(席の奪い合い)、非競合阻害はn↓・K不変(席そのものが減る)
- グラフは不動点を探して、そこを支点に回すか平行移動する。 競合ならnの切片が不動、非競合ならKの側が不動
- ラングミュア式はミカエリス・メンテン式と同じ形なので、酵素の阻害グラフと同じ読み方がそのまま通用する
次は薬の移行性(脳内・胎児・母乳・リンパ)まとめを読んでみてください。分布の最後は、血液から先——脳・胎児・母乳・リンパという特別な行き先の話です。
動画で学びたい人へ
この内容は、YouTubeの講義動画でも解説しています。
薬剤を、1枚の地図として頭に入れませんか
この記事の冒頭に載せたマインドマップは、薬剤という科目のほんの一区画です。実際には、吸収から分布・代謝・排泄、そして製剤設計までが、1枚の地図としてひと続きにつながっています。
解説授業は、その地図を端から端まで、実際にたどりながら話していく全33本・約11時間。「なぜこの薬がここで出てくるのか」「さっき覚えたあの話が、どこにつながるのか」が、バラバラの知識ではなく流れとして入ってきます。細切れに暗記してきたものが、1本の線になる感覚です。
薬剤のマインドマップPDF+解説授業セットは¥9,450。無料のサンプル動画とサンプルPDFがあるので、この「たどる」感覚が自分に合うかどうかは、先に確かめられます。